

Uusi geneettinen tutkinta viittaa siihen, että ensimmäiset askeleet kohti monimutkaisia, tumallisia soluja — amebasta ihmiseen johtavien eliöiden esi-isiä — alkoivat lähes 3 miljardin vuoden takaa. Tämä ajankohta siirtää eukaryoottisen monimutkaisuuden alkuperää jopa miljardilla vuodella aikaisemmaksi ja viittaa hitaaseen evolutiiviseen rakentumiseen, joka edelsi maapallon merkittävää hapen lisääntymistä.
Uudelleen arviointi: milloin monimutkaisuus alkoi
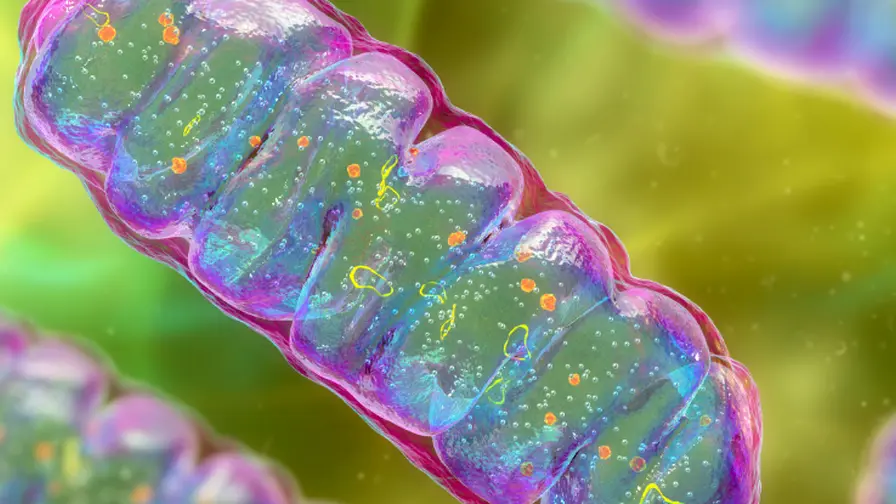
Maapallon elämä jaetaan usein kahteen suureen kastiin: prokaryooteihin (bakteerit ja arkeonit) ja eukaryooteihin (solut, joissa on tuma ja soluelimiä). Prokaryooteilla arvioidaan olevan varhaisimmat juuret noin 4 miljardin vuoden takana; ne ovat kompaktija, tehokkaita soluja, joissa DNA on vapaasti solulimassa ja sisäinen rakenne on suhteellisen yksinkertainen. Eukaryooteilla sen sijaan on sisäisiä kalvorakenteita, tumakeytimen kaltaisia rakenteita ja organelleja kuten mitokondriot, jotka mahdollistavat suuremmat ja tiukemmin säädellyt genomit sekä monimutkaisemmat soluprosessit.
Kuitenkin juuri se hetki ja tapa, jolla tämä hyppy kohti solujen sisäistä monimutkaisuutta tapahtui, on ollut pitkään kiistanalainen. Keskeinen epävarmuus liittyy mitokondrioiden saapumisen ajoitukseen — muinaiseen yhteistyöhön, jossa vapaana elänyt bakteeri päätyi solun energiatehtaaksi. Aiheuttaaanko eukaryoottiset ominaisuudet mitokondrioiden myötä vai kehittyivätkö proto‑eukaryootit monimutkaisemmiksi ensin ja hankkivat mitokondriot vasta myöhemmin?
Miten molekyylikello kirjoittaa aikajanat uusiksi
Tämän ongelman selvittämiseksi paleobiologi Christopher Kayn (Bristolin yliopisto) johtama ryhmä hyödyntää laajaa molekyylikellon analyysiä satojen lajien välillä. Molekyylikellot arvioivat lajien erilaistumisaikoja vertaamalla DNA‑tai proteiinisekvenssejä ja soveltamalla mutaatiokantoja, jotka on kalibroitu fossiilisen aineiston avulla. Hanke yhdisti fylogeneettisiä menetelmiä, paleontologiaa ja molekyylibiologiaa sijoittaakseen tiettyjen geeniperheiden syntymät absoluuttiselle aikajanalle.

Tiimin laatima eukaryoottien evoluution aikajana
Tutkijat kehittivät CALM‑mallin — Complex Archaeon, Late Mitochondrion — kartoittaakseen, milloin tietyt eukaryoottiset piirteet ilmestyivät. Sen sijaan, että olisi nojattu muutamaan markkerigeeniin, he seurasivat satoja geeniperheitä, jotka muodostavat eukaryoottien tunnusomaiset rakenteet ja prosessit, kuten sytoskeletonin komponentit, kalvorakenteisiin liittyvät proteiinit ja transkription säätelyyn osallistuvat molekyylit.
Tärkeimmät löydökset: varhainen tukirunko, myöhäinen mitokondrio
Tulokset ovat merkittäviä. Aktiiniin ja tubuliiniin liittyvien proteiinien jäljet sekä alkavat sytoskeletoniset rakenteet ja varhainen protonucleus näkyvät noin 2,9–3,0 miljardin vuoden takaa. Myöhemmissä aallonoissa kehittyivät sisäiset kalvorakenteet, Golgin laitteistoon liittyviä komponentteja sekä laajentuneet geeniekspressioon osallistuvat järjestelmät, kuten monimuotoiset RNA‑polymeraasit. Nämä rakenteet muodostavat solun organisoinnin peruspilarit: kromosomien järjestely, solunulkoisen ja sisäisen aineenvaihdunnan koordinaatio sekä solunsisäinen kuljetus.
Sen sijaan mitokondrioiden kantaa edeltävä linja ajoittuu huomattavasti myöhemmäksi, noin 2,2 miljardin vuoden taakse. Tämä ajoitus on läheisessä samassa ajanjaksossa Suuren oksidaatiotapahtuman (GOE, Great Oxidation Event) kanssa, jolloin ilmakehän hapen määrä nousi merkittävästi. Tulkinta on siten kaksijakoinen: moni eukaryoottinen innovaatio oli jo käynnissä vähähappisissa olosuhteissa, mutta mitokondrioiden saapuminen ja muuttuneet redoks‑olosuhteet todennäköisesti kiihdyttivät monimuotoistumista ja rakenteellista monimutkaisuutta.
Tämän mallin mukaan proto‑eukaryootit olisivat kehittäneet systeemisiä toimintatapoja, jotka paransivat genomien hallintaa ja solunsisäistä logistiikkaa. Nämä varhaiset sovellukset antaisivat valintapaineita monimutkaisten kalvojen ja tukirangan kehitykseen, vaikka energian saatavuus olisikin ollut rajallista.
Miksi tämä on tärkeää evoluutiobiologialle
Jos varhaiset eukaryoottiset ominaisuudet todella syntyivät miljardeja vuosia ennen mitokondrioita, se viittaa vaiheittaiseen innovaatioketjuun eikä yksittäiseen dramaattiseen hypähdykseen. Yksinkertaiset sytoskeletonijärjestelmät ja jakautumista ohjaavat kalvorakenteet olisivat tarjonneet organisatorisia etuja — parempi genomin hallinta, tehokkaampi solunsisäinen kuljetus ja paikallinen regulaatio — jopa täysin anoksisessa ympäristössä. Tällaiset edut voivat olla kriittisiä solun kokoon, jakautumiseen ja siihen, miten solut vastasivat ympäristömuutoksiin.
Kun hapen määrä nousi ja mitokondriot liitettiin osaksi solua, energian tuottamisen tehokkuus (ATP‑synteesi) kasvoi huomattavasti. Tämä energiantuoton tehostuminen mahdollisti energiaintensiiviset prosessit, kuten laajempien genomin rakenteiden ylläpidon, solunlaajuisen organisoinnin ja uusien ekologisten roolien täyttämisen. Näin mitokondrioiden endosymbioosi saattoi olla katalysaattori nopeammalle kompleksisuuden kasvulle, mutta se ei välttämättä ollut koko tarinan alku.
Menetelmällinen syvyys ja monitieteinen työ
Tutkimuksen erottava piirre on sen geenitasoinen resoluutio, joka on sidottu absoluuttiseen aikaan. Tutkijat analysoivat proteiinien vuorovaikutuksia, ryhmittelivät geeniperheitä funktionaalisesti ja ankkuroivat molekyyliset muutokset fossiiliaineiston avulla. Näin he eivät ainoastaan rakentaneet perinteistä suvun haarautumista kuvaavaa puuta, vaan rekonstruoivat solujärjestelmien vaiheittaisen syntymän. Tämä vaati poikkitieteellistä osaamista: paleontologeja ikärajojen määrittelyyn, fylogeneetikkoja vahvojen puiden rakentamiseen ja molekyylibiologeja geenien toiminnan tulkintaan.
Tällainen lähestymistapa mahdollistaa tarkempia evolutiivisia kysymyksiä: mitkä molekyylimoduulit nousivat ensin, mitkä otettiin käyttöön tai uudelleen käyttöön myöhemmin ja miten ympäristömuutokset — erityisesti redoksiolosuhteet ja ravinteiden saatavuus — ohjasivat biologista innovaatiota. Menetelmällinen läpinäkyvyys ja laaja taksonominen otanta kasvattavat tulosten luotettavuutta ja toistettavuutta, mutta ne myös nostavat esiin uusia testejä ja hypoteeseja.
Lisäksi proteiinien kokeellinen rekonstruointi ja paleometabolian simulaatiot antavat mahdollisuuden arvioida, miten varhaiset solunrakenteet toimivat käytännössä. Jos varhaiset aktiini‑ ja tubuliinijohdannaiset pystyivät muodostamaan yksinkertaisia verkostoja tai johtamaan solun sisäistä liikennettä, se vahvistaisi mallin biologista uskottavuutta.
Seuraukset ja tulevat suuntaukset
Nämä löydökset uudelleenmäärittelevät pitkän elämän historian käsityksiämme. Ne ehdottavat, että monimutkainen solujärjestely kehittyi hitaasti vähähappisissa oloissa ja laajeni sitten nopeasti energiatasojen kasvaessa. Tämä näkökulma vaikuttaa myös siihen, miten etsimme monimutkaista elämää muualla universumissa: elämä voi kasaantua vaiheittain ja saavuttaa monimutkaisuuden tasoja kauan ennen planeetan laaja‑alaista hapen lisääntymistä.
Tulevassa työssä on useita mahdollisia linjoja: ajoitusarvioiden tarkentaminen, CALM‑mallin testaaminen laajemmilla genomiikka‑aineistoilla sekä ympäristötekijöiden — ravinteiden, redoks‑tilan ja mikrobiellin ekologian — vaikutusten kartoittaminen. Muinaisten kivijäämien geokemialliset tutkimukset, uudet biomarkkerit ja yhä täydellisemmin sekvensoidut genomet monipuolisista mikrobioryhmistä auttavat luomaan entistä tarkemman ja yksityiskohtaisemman kuvan eukaryoottien synnystä.
Moniin kysymyksiin liittyy vielä epävarmuutta. Esimerkiksi molekyylikellojen kalibrointi fossiilisten jakopisteiden perusteella kantaa oman epätarkkuutensa, ja vaakakupissa on vaihtoehtoisia selityksiä geenien alkuperälle, kuten vaakaan vaikuttavat tapahtumat horizontal gene transfer -ilmiöissä. Yhteistyö geokemian ja paleobiologian välillä onkin välttämätöntä, jotta voimme erotella biologiset muutokset maanolentojen ympäristömuutoksista.
Asiantuntijan näkemys
"Nämä tulokset maalaavat kuvan inkrementaalisesta innovaatiosta pikajuoksun sijaan", sanoo tutkimukseen osallistumaton evoluutiobiologi tohtori Elaine Moreno. "Se, että sytoskeletonin komponentit ja kalvorakenteet näkyvät niin varhaisessa vaiheessa, kertoo siitä, että luonnonvalinta testasi solun sisäistä arkkitehtuuria kauan ennen mitokondrioiden saapumista. Hapetus ja mitokondriaalinen endosymbioosi saattoivat sitten mahdollistaa näiden esimuotojen nopean skaalaamisen suuremmiksi, energiaintensiivisemmiksi järjestelmiksi."
"Käytännön tasolla tämä työ korostaa fossiilien, toiminnallisesti informoitujen geenipuuhun perustuvien analyysien ja laajan taksonomisen otannan yhdistämisen arvoa. Se on vahva malli syvien evolutiivisten siirtymien tutkimukseen", hän lisää.
Mitä seurata seuraavaksi
- Arkeonien ja syvälle haarautuvien eukaryoottien genomiotiedon laajentaminen, jotta voidaan testata varhaisten eukaryoottisten merkkien yleispätevyyttä. Tämä sisältää metagenomiikan ja yksittäissolusekvensoinnin hyödyntämisen ennennäkemättömiin mikrobiologisiin näytteisiin.
- Geokemialliset tutkimukset, jotka tarkentavat hapen nousujen ajoitusta ja alueellista vaihtelua varhaisella Maalla, mukaan lukien isotooppianalyysit ja sedimenttikemian uudet menetelmät.
- Kokeelliset tutkimukset esi‑proteiinien rekonstruoinnista ja funktionaalisista testeistä, joiden avulla arvioidaan, miten primitiiviset sytoskeletonielementit toimivat vähähappisissa ympäristöissä ja millaisia mekaanisia tai transporttisominaisuuksia niillä oli.
Yhteenvetona voidaan todeta, että CALM‑malli ja laaja molekyyligeneettinen analyysi tarjoavat vakuuttavia todisteita siitä, että eukaryoottinen organisointi alkoi varhain ja että mitokondrioiden saapuminen oli yksi tärkeä, mutta ei yksin määräävä tekijä monimutkaisuuden kehittymisessä. Tämä paradigmanmuutos laajentaa käsitystämme solun evoluutiosta ja avaa uusia polkuja tutkimukselle, joka pyrkii ymmärtämään elämän syvimpien siirtymien mekanismeja ja ajoitusta.

"Olen tähtitieteen harrastaja ja kirjoitan avaruuden kiehtovista ilmiöistä. Genomissa jaan havaintoja ja uutisia kosmoksesta."
Keskustelu
Jätä kommentti
Kommentit
Ei vielä kommentteja. Ole ensimmäinen.